


“今この瞬間”を記憶する仕組みを発見
~ショウジョウバエを使った研究が、双極性障害などの分子機構にもブレークスルー~
2026年9月24日
ポイント
-
“即時性シナプス増強”(神経細胞の連発した活動によるシナプスの即時的強化)の分子機構を解明
-
シナプトタグミン7の分子内相互作用が即時性シナプス増強を起こし、それが即時記憶を作る
-
シナプトタグミン7の分子機構の解明は、双極性障害、がんなどの治療に応用される可能性がある
国立研究開発法人情報通信研究機構(NICT、理事長: 大野 英男)の吉原 基二郎上席研究員らのグループは、未来ICT研究所において、即時記憶を担う分子的基盤を発見しました。瞬時にシナプス伝達を強くする“即時性シナプス増強”は古くから知られていても、その仕組みも意義も分かっていませんでした。それがシナプトタグミン7というタンパク質の分子内相互作用によって起こることを発見するとともに、その分子の作用が、今まで何の仕組みも分かっていなかった即時記憶にも機能しているという手掛かりを得ました。本研究成果は、更に長期記憶の仕組みの理解に発展し、記憶の基本原理解明につながることが期待されます。また、遺伝学のモデル動物であるショウジョウバエを活用したシナプトタグミン7の分子機構解明は、シナプトタグミン7の関与が示唆されている双極性障害やがんなどの分子機構の理解にも突破口を開き、治療へ応用されることが期待されます。
なお、本成果は、2026年9月21日(月)に、米国科学雑誌「米国科学アカデミー紀要(PNAS)」に掲載されました。
背景
未解明な脳内の記憶の仕組みが明らかになると、これまでよりも脳の機能に近い知的情報処理をデザインできます。そこで、NICT未来ICT研究所 記憶神経生物学プロジェクトでは、脳内情報通信のキーである記憶の基本原理を追求し、それを情報通信に応用する研究に取り組んでいます。
今回の成果
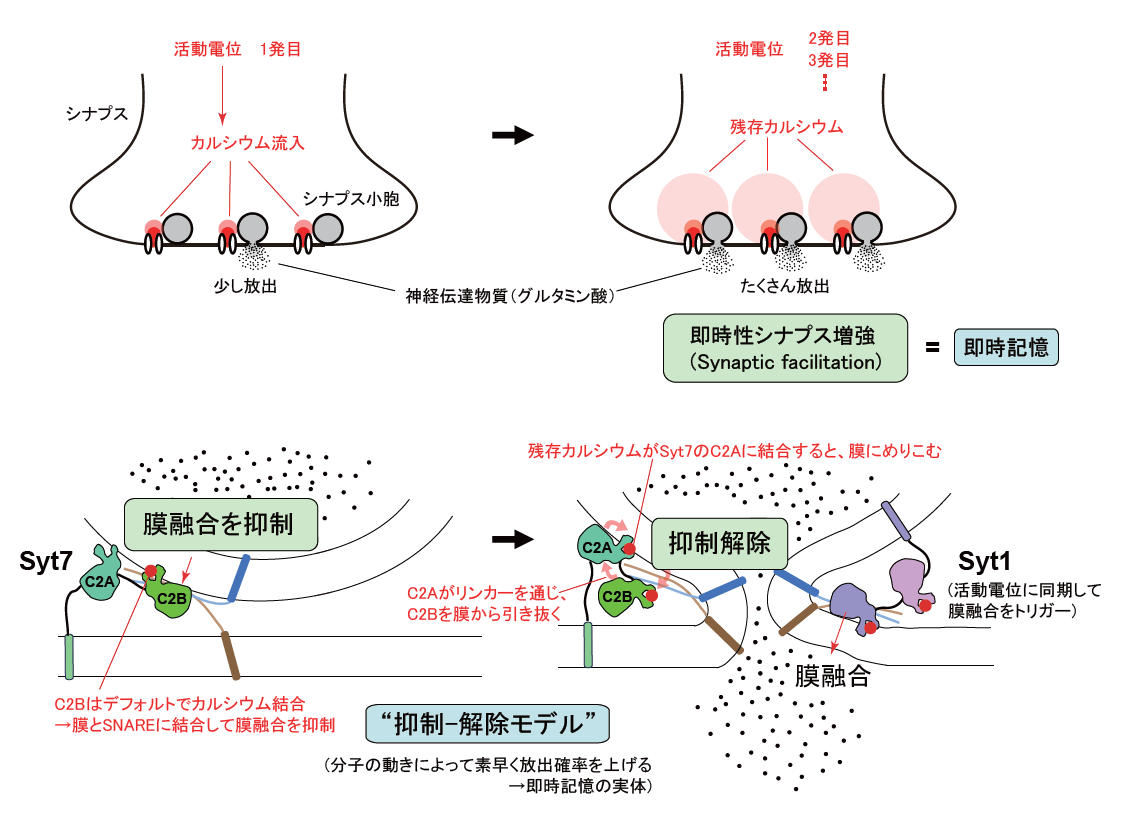
図1 即時記憶と即時性シナプス増強の仕組み
Syt7の分子内相互作用によって抑制が解除される
[画像クリックで拡大表示]
Syt7の分子内相互作用によって抑制が解除される
[画像クリックで拡大表示]
“たった今見たもの”、“たった今聞いたこと”を私たちは鮮明に記憶しています。櫻井晃研究マネージャー、藤居孝聡研究技術員、吉原基二郎上席研究員のグループは、今まで実験的にアプローチする手掛かりさえもなかった、この即時記憶の分子機構を発見しました。
当グループは、まず、活動電位が連発するにつれてシナプス伝達が強くなる“即時性シナプス増強”の仕組みに着目しました。即時性シナプス増強は古くから知られる、主な生理学者が着目してきた顕著な現象でしたが、その仕組みも意義も分かっていませんでした。当グループは、可塑性に富み、詳細な遺伝解析が可能なショウジョウバエ胚(卵)のシナプスの利点を活用したシナプス伝達の遺伝解析により、シナプトタグミンファミリーの中で低濃度のカルシウムに反応するシナプトタグミン7 (Syt7)が、前の活動の残り香のような“残存カルシウム”に反応して伝達物質の放出確率を上げていることを見出しました(図1参照)。“ショウジョウバエならでは”の詳細にわたる遺伝解析により、Syt7の一つのドメイン(C2B)によるデフォルトの放出抑制をもう一つのドメイン(C2A)が解除することによって放出確率を上げていることが明らかになりました。
この遺伝解析の過程で、即時性シナプス増強が特異的に欠損した様々な突然変異体が発見されました。これらの突然変異体の記憶能力を、ショウジョウバエ成虫を使った独自のパブロフ条件反射の実験系(関連する過去のプレスリリース(2021年8月5日)参照)を用いて調べたところ、顕著な記憶異常が見付かりました。この結果は、瞬間的にシナプス伝達を強くすることができる即時性シナプス増強こそが即時記憶の脳内実体の少なくとも一部である可能性を示唆するもので、これまで全く手掛かりすらもなかった即時記憶の仕組みの解明に向けて、初めて突破口が開かれました。
一方、本研究は、ショウジョウバエ遺伝学を駆使してSyt7の働く分子メカニズムを初めて解明した研究であるため、Syt7の関与が示唆されている疾患の治療にもブレークスルーを作ることが期待されます。例えば、双極性障害の患者ではSyt7が少ないことが報告されていますが、その影響でドーパミンなどの神経修飾物質分泌の抑制が健常者に比べて不足し、分泌過剰を生じることが症状に影響している可能性があります。また、双極性障害の患者において報告されている即時記憶の一種であるワーキングメモリーの異常も本研究からその理由が理解されます。双極性障害の代表的な合併症が症状のかけ離れた糖尿病であることも謎とされてきましたが、Syt7はシナプスのみならず分泌一般で働くと予想されるため、分泌抑制不全によって血糖値制御に関わる何らかのホルモンの過剰分泌が起きていると推測すると統一的に理解できます。さらに、Syt7の関与が報告されているがんの作用機序の理解、ひいては創薬などによる治療にも、本研究での知見が役立つと期待されます。
今後の展望
即時性シナプス増強はプレ側(シナプスで信号を送る側)の変化ですが、即時記憶から長期記憶への変換のためにはポスト側(シナプスで信号を受け取る側)の活動がこれに結びつくと予測されるため(用語解説参照)、ショウジョウバエの自在な遺伝学的操作を活用してポスト側の活動の寄与について更に研究を進めることで、当グループから提唱された記憶の一般仮説、“局所フィードバック仮説(Science, 2005)”を検証し、それによって、記憶の仕組みが解き明かされることが期待されます。
論文情報
著者: Akira Sakurai, Takaaki Fujii and Motojiro Yoshihara
論文名: Calcium sensing by C2A domain of Synaptotagmin 7 is required through the linker for both synaptic facilitation and memory
掲載誌: Proceedings of the National Academy of Sciences of the United States of America (米国科学アカデミー紀要)
DOI: 10.1073/pnas.2528214123
関連する過去のプレスリリース
- 2021年3月1日 脳の短期記憶のスイッチメカニズムを発見
https://www.nict.go.jp/press/2021/03/01-2.html - 2021年8月5日 パブロフ条件反射の正体を発見
https://www.nict.go.jp/press/2021/08/05-1.html
なお、本研究の一部は、文部科学省科学研究費補助金基盤研究A「“記憶の局所フィードバック仮説”ーその中枢単一同定ニューロンでの検証」(研究者: 吉原基二郎; JP19H00998)、文部科学省科学研究費補助金基盤研究A「“記憶の局所フィードバック仮説” - 単一細胞上での短・長期記憶の追跡による検証」(研究者: 吉原基二郎; 22H00420)、文部科学省科学研究費補助金基盤研究A 「“記憶の局所フィードバック仮説”-シナプス新生の記憶時リアルタイム追跡による検証」(研究者: 吉原基二郎; 25H00996)、文部科学省科学研究費補助金若手研究(研究者: 櫻井晃; JP19K16275)、文部科学省科学研究費補助金基盤研究C「コマンドニューロンの可塑的変化による連合学習機構-その分子基盤のリアルタイム解析(研究者: 櫻井晃; 22K06439)、学術変革領域研究(A)、動的コネクトームに基づく脳機能創発機構の解明、「連合学習による記憶の生成と消失を創発する司令ニューロンシナプスの動態解析(研究者: 櫻井晃; 25H02530)の助成を受けて行われました。
用語解説
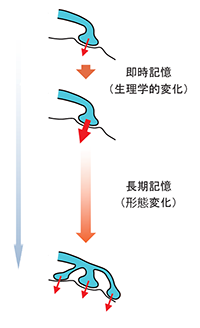
図2 Hebbの考えた即時記憶と長期記憶
即時記憶(Instantaneous memory)
Hebb(1949)は、その古典的著書“The organization of behavior”において、脳が記憶する時、まず、即時的なシナプス強化が”生理学的な”仕組みによって生ずる、と考えた。その瞬時に経験したことを我々は感じることができるからである。その生理学的な変化がその後時間をかけてシナプスの形の変化を引き起こし、記憶を保持し続けるシナプスになる、とHebbは考えた(図2参照)。そんな瞬時に爪痕を残すことのできる「即時的におこる生理学的な変化とは何か?」という生物学的な問いに対し、初めて答えを与えたのが本研究である。Syt7の分子運動(図1参照)は一瞬にして起こるので、その動きによって瞬時に作られる即時性シナプス増強こそが即時記憶の脳内実体であることが、本研究から推測される。
“短期記憶(short-term memory)”と混同されがちであるが、短期記憶は、短い時間(1秒以下から数分まで、実験系、対象により、様々であるが)維持されたのちに消滅する記憶を意味する。全ての記憶の初期段階で生ずる即時記憶は、短期で失われるものもあるし、記憶の強さによっては、Hebbが語ったようにその後、長期記憶として維持される永続的なものもある。思考のため一時的に維持される記憶、”ワーキングメモリー”は、心理学においてはその目的が特殊であるために即時記憶や短期記憶と違うカテゴリーとして分類がなされていることもあるが、細胞の機能を一般的に捉えることを試みる神経生物学においては、「即時記憶であり(すぐにできて)、かつ、短期記憶である(すぐに消える)」と言える。
“短期記憶(short-term memory)”と混同されがちであるが、短期記憶は、短い時間(1秒以下から数分まで、実験系、対象により、様々であるが)維持されたのちに消滅する記憶を意味する。全ての記憶の初期段階で生ずる即時記憶は、短期で失われるものもあるし、記憶の強さによっては、Hebbが語ったようにその後、長期記憶として維持される永続的なものもある。思考のため一時的に維持される記憶、”ワーキングメモリー”は、心理学においてはその目的が特殊であるために即時記憶や短期記憶と違うカテゴリーとして分類がなされていることもあるが、細胞の機能を一般的に捉えることを試みる神経生物学においては、「即時記憶であり(すぐにできて)、かつ、短期記憶である(すぐに消える)」と言える。
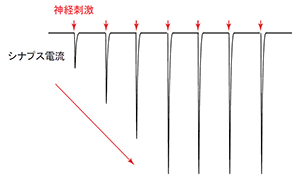
図3 即時性シナプス増強
電気生理記録でみられるシナプス電流の模式図
電気生理記録でみられるシナプス電流の模式図
即時性シナプス増強(Synaptic facilitation)
活動電位が連続してシナプス部に到達するとき、前の活動電位によって流入したカルシウムの“残り香”=“残存カルシウム”によって後の活動電位によるシナプス伝達が強くなる現象。太平洋戦争の始まる直前、1940年に中華民国のFengによって初めて報告された。以来、EcclesやKatzなどの主要な生理学者によって研究されてきたが、その分子機構もその意義も謎のままだった。
かつて”シナプス促通”という訳語が当てられていた。この文学的で格調の高い訳語に敬意を払うところはあるが、実際のシナプスで起こる現象をこの訳語から直感的に想像することは、現象を既に熟知する専門家以外には困難で、理解を助ける概念としての意義が薄かった。“促通”とだけ聞くと、「"通じ”を促す」という意味の婉曲的表現とも誤解されかねない。そこで、その分子メカニズムが明らかになったこの機会に、実験時の電気生理記録(図3参照)や脳内での現象を直感的に想像させ、また、長期増強などの他のシナプス可塑性の用語とも馴染みのいい新しい訳語として、“即時性シナプス増強”に変更したい。
かつて”シナプス促通”という訳語が当てられていた。この文学的で格調の高い訳語に敬意を払うところはあるが、実際のシナプスで起こる現象をこの訳語から直感的に想像することは、現象を既に熟知する専門家以外には困難で、理解を助ける概念としての意義が薄かった。“促通”とだけ聞くと、「"通じ”を促す」という意味の婉曲的表現とも誤解されかねない。そこで、その分子メカニズムが明らかになったこの機会に、実験時の電気生理記録(図3参照)や脳内での現象を直感的に想像させ、また、長期増強などの他のシナプス可塑性の用語とも馴染みのいい新しい訳語として、“即時性シナプス増強”に変更したい。
シナプトタグミン7 (Synaptotagmin 7)
シナプトタグミンファミリーのシナプトタグミン7(Syt7)は、Syt1とは逆方向に、細胞膜の方に膜貫通ドメインでつなぎとめられ、低濃度のカルシウムに反応し結合するとシナプス小胞について、膜融合を制御すると考えられる(図1参照)。Syt7の発現量が多いほどシナプス伝達をより強く抑制することが、当グループの先行研究から分かっていた(Fujii et al., Sci. Rep. 2021; 関連する過去のプレスリリース(2021年3月1日)参照)。
以前、Harvard大学のRegehr博士の研究室から、Syt7のノックアウトマウスで即時性シナプス増強が見られないことから、Syt7が即時性シナプス増強のカルシウムセンサーとして同定されたかのように誤解された論文がNature誌に発表された(2016)。しかし、本研究で明らかになったように、Syt7による抑制を解除するにはまずその抑制が必要で、抑制がかかっていなければ、そもそも即時性シナプス増強は起こり得ない。よって、抑制の欠損したノックアウトマウスの症状を見ることによって即時性シナプス増強を引き起こすカルシウム感受性について問うことは不可能なのである。Regehr研究室からのこの論文は、「Syt7は即時性シナプス増強がおこるために必要な前提条件である」ことを意味する重要な一歩ではあったが、Syt7が即時性シナプス増強のカルシウムセンサーであることを示したわけではなかった。Syt7のノックアウトマウスで即時性シナプス増強が見られなかったのは、抑制がなくて、最初からシナプス伝達が著しく大きいために増強比の分母が巨大となり、さらに、デフォルトで大きな伝達のために伝達物質を内包するシナプス小胞が枯渇するためと考えられる。即時性シナプス増強のためのカルシウムセンサー(“高親和性カルシウムセンサー”)は、本研究によって初めて、Syt7のC2Aドメインとして同定された。
この例のように、実験結果から因果関係を導出する際には、当グループが以前警鐘をならした論説がNatureの社説にもとりあげられたように(Nature, 558: 162, 2018; Yoshihara & Yoshihara 2018 J. Neurogenet.)、細心の注意を要する。現在の生物学一般において、 “偽の必要かつ十分“という、形式論理学の言葉を不正に借りた”似非論理”があまりにも広く流布されてしまっているため、実験結果を解釈する際には、特に注意が必要である。Syt7の場合も、“偽の必要かつ十分“を示す実験結果は極めて安易に得られてしまうので、誤った理解をつくる一方で理解したような気分を演出する”似非論理”には要注意である(吉原、“necessary & sufficient”に気をつけてー若き生命科学者の健全な思考法のために-、実験医学 Trend Review 2019年 Vol.37 No.4 (3月号)571-578 羊土社)。
以前、Harvard大学のRegehr博士の研究室から、Syt7のノックアウトマウスで即時性シナプス増強が見られないことから、Syt7が即時性シナプス増強のカルシウムセンサーとして同定されたかのように誤解された論文がNature誌に発表された(2016)。しかし、本研究で明らかになったように、Syt7による抑制を解除するにはまずその抑制が必要で、抑制がかかっていなければ、そもそも即時性シナプス増強は起こり得ない。よって、抑制の欠損したノックアウトマウスの症状を見ることによって即時性シナプス増強を引き起こすカルシウム感受性について問うことは不可能なのである。Regehr研究室からのこの論文は、「Syt7は即時性シナプス増強がおこるために必要な前提条件である」ことを意味する重要な一歩ではあったが、Syt7が即時性シナプス増強のカルシウムセンサーであることを示したわけではなかった。Syt7のノックアウトマウスで即時性シナプス増強が見られなかったのは、抑制がなくて、最初からシナプス伝達が著しく大きいために増強比の分母が巨大となり、さらに、デフォルトで大きな伝達のために伝達物質を内包するシナプス小胞が枯渇するためと考えられる。即時性シナプス増強のためのカルシウムセンサー(“高親和性カルシウムセンサー”)は、本研究によって初めて、Syt7のC2Aドメインとして同定された。
この例のように、実験結果から因果関係を導出する際には、当グループが以前警鐘をならした論説がNatureの社説にもとりあげられたように(Nature, 558: 162, 2018; Yoshihara & Yoshihara 2018 J. Neurogenet.)、細心の注意を要する。現在の生物学一般において、 “偽の必要かつ十分“という、形式論理学の言葉を不正に借りた”似非論理”があまりにも広く流布されてしまっているため、実験結果を解釈する際には、特に注意が必要である。Syt7の場合も、“偽の必要かつ十分“を示す実験結果は極めて安易に得られてしまうので、誤った理解をつくる一方で理解したような気分を演出する”似非論理”には要注意である(吉原、“necessary & sufficient”に気をつけてー若き生命科学者の健全な思考法のために-、実験医学 Trend Review 2019年 Vol.37 No.4 (3月号)571-578 羊土社)。
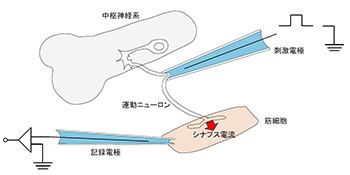
図4 ショウジョウバエ胚の神経筋シナプスでのシナプス電流の記録
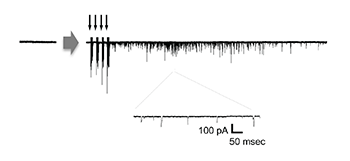
図5 ショウジョウバエ胚の神経筋シナプスでの可塑的変化。高頻度刺激すると、微小シナプス電流が誘起される。
ショウジョウバエ胚(卵)のシナプス
ショウジョウバエの卵の中で育つ胚の運動ニューロンと筋細胞の間のシナプス(図4参照)。ショウジョウバエ遺伝学が縦横無尽に活用できる上に、発生途上ゆえに可塑性に富んでおり(Yoshihara et al., J. Neurosci. 1997)、記憶のメカニズムのモデルシナプスとして理想的である。当グループはかつてこの実験系を活用して、シナプス可塑性の実験を行い(図5参照)、記憶の一般仮説として、“局所フィードバック仮説”を結論した(Yoshihara et al., 2005, Science)。もう一つの利点として、ミオシンの突然変異体を使って筋細胞が収縮しないようにする方法 (Yoshihara et al., J. Neurosci. 2000)が使えるので、様々な実験条件で安定した電気記録が可能である。しかも、同定されたシナプスであるので、シナプス電流を絶対値として計測することが可能である。そのため、本研究においても、抑制異常が巨大なシナプス電流として定量可能なため、マウスの実験では同じに見えた抑制異常と即時性シナプス増強の異常が、全く異なる症状として認識することができた。それによってJackman et al.(2016, Nature)の解釈は誤っていたことが明確になり、Syt7のC2Aドメインが即時性シナプス増強のカルシウムセンサーとして働いている真の証拠を提示することに成功した(用語解説参照)。
シナプスレベルでは、人を含む哺乳類とショウジョウバエの間でほぼ同じタンパク質がどちらもフルセットそろっていて、それぞれの分子が非常に似た働きをすることによってシナプスが営まれている。そのため、遺伝学的解析が容易なショウジョウバエで分子機能を解析する、という戦略が一般的な分子機能を知るために有効となる。たとえば、当グループの前身において、膜融合装置タンパクであるシナプトブレビン(Yoshihara et al., J. Neurosci., 1999)、伝達物質の分泌をトリガーするシナプトタグミン1 (Yoshihara and Littleton, Neuron 2002; 用語解説参照) の機能がまずショウジョウバエの研究で明らかになり、のちに、Sudhof博士の研究室においてマウスを使ったほぼ同じ結果が確認された(Schoch et al., Science, 2001; Sun et al., Nature 2007)。それらの結果を元にSudhof博士にノーベル賞が授与されたことからも、 ショウジョウバエの研究も微力ながら貢献したということができる。縦横無尽な遺伝学によって分子の働きを詳細に理解することができるショウジョウバエを使った研究を通して分かった分子メカニズムが記憶の仕組みの理解にもつながり、また、その分子機能はヒトの病気にまで応用されることが期待できる。
シナプスレベルでは、人を含む哺乳類とショウジョウバエの間でほぼ同じタンパク質がどちらもフルセットそろっていて、それぞれの分子が非常に似た働きをすることによってシナプスが営まれている。そのため、遺伝学的解析が容易なショウジョウバエで分子機能を解析する、という戦略が一般的な分子機能を知るために有効となる。たとえば、当グループの前身において、膜融合装置タンパクであるシナプトブレビン(Yoshihara et al., J. Neurosci., 1999)、伝達物質の分泌をトリガーするシナプトタグミン1 (Yoshihara and Littleton, Neuron 2002; 用語解説参照) の機能がまずショウジョウバエの研究で明らかになり、のちに、Sudhof博士の研究室においてマウスを使ったほぼ同じ結果が確認された(Schoch et al., Science, 2001; Sun et al., Nature 2007)。それらの結果を元にSudhof博士にノーベル賞が授与されたことからも、 ショウジョウバエの研究も微力ながら貢献したということができる。縦横無尽な遺伝学によって分子の働きを詳細に理解することができるショウジョウバエを使った研究を通して分かった分子メカニズムが記憶の仕組みの理解にもつながり、また、その分子機能はヒトの病気にまで応用されることが期待できる。
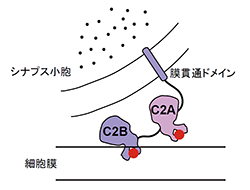
図6 シナプトタグミンファミリーの代表、シナプトタグミン1(Syt1)。
膜貫通ドメインでシナプス小胞につなぎとめられており、二つのカルシウム結合ドメインがカルシウム(赤)を結合すると、細胞膜にめりこむ。
膜貫通ドメインでシナプス小胞につなぎとめられており、二つのカルシウム結合ドメインがカルシウム(赤)を結合すると、細胞膜にめりこむ。
シナプトタグミンファミリー (Synaptotagmin family)
シナプトタグミンファミリーの分子は全て、図6のシナプトタグミン1(Syt1)のように、膜貫通ドメインで膜につながれていて、二つのタンデムに並んだカルシウム結合ドメイン、C2A、C2Bを持つ。カルシウム結合ドメインにカルシウムが結合すると膜にめりこむことにより、二つの膜構造を橋渡しすることができるタンパク質ファミリーである。最もよく研究されているSyt1は、神経伝達物質を内包するシナプス小胞膜につながれていて、高濃度のカルシウムに反応して細胞膜につくことによって、膜融合を引き起こし、伝達物質の分泌をトリガーする。神経細胞の活動に応じたシナプス伝達を誘導する“低親和性カルシウムセンサー”と呼ばれる。
Syt1の場合、C2Aドメインが活動電位に同期しない伝達物質の放出を抑制し、C2Bドメインが活動電位に同期した伝達物質の放出をトリガーする。この二つのドメインの拮抗がカルシウムセンシングの精度を鋭敏にしていることは、当グループによって発見された(Yoshihara et al., PNAS, 2010)。この研究に触発されて、本研究でSyt7のC2ドメイン間の拮抗が調べられた。この拮抗こそが、シナプトタグミンファミリーの分子が二つのC2ドメインを持つ理由であると、当グループでは考えている。
Syt1の場合、C2Aドメインが活動電位に同期しない伝達物質の放出を抑制し、C2Bドメインが活動電位に同期した伝達物質の放出をトリガーする。この二つのドメインの拮抗がカルシウムセンシングの精度を鋭敏にしていることは、当グループによって発見された(Yoshihara et al., PNAS, 2010)。この研究に触発されて、本研究でSyt7のC2ドメイン間の拮抗が調べられた。この拮抗こそが、シナプトタグミンファミリーの分子が二つのC2ドメインを持つ理由であると、当グループでは考えている。
残存カルシウム (Residual calcium)
活動電位によってシナプス前終末にカルシウムが流入することにより急激にカルシウム濃度が上昇し、そのカルシウムがSyt1に結合して膜融合がおこり、グルタミン酸などの神経伝達物質が放出される。そのときのカルシウム上昇は時間経過とともに約100ミリ秒の時定数で薄まるが、その“残り香”のように留まるカルシウムが“残存カルシウム”と呼ばれる。即時性シナプス増強のために残存カルシウムを感知するためには、“低親和性カルシウムセンサー”として働くSyt1以外に、第二のセンサー、“高親和性カルシウムセンサー”の存在が必要であることが理論的に予測され(Yamada and Zucker, 1992)、実際に残存カルシウムが即時性シナプス増強をひきおこすことが実験的に示された(Kamiya & Zucker, 1994)。
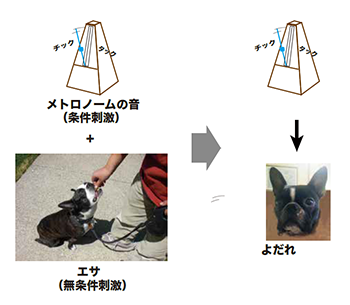
図7 イヌを使ったパブロフの条件反射
パブロフの条件反射 (Pavlovian conditioning)
イワン・パブロフが19世紀末にイヌを使って行った実験。また、同じ構造で行われる行動実験の総称(“古典的条件付け”という用語はあえて避けている; 吉原、Clinical Neuroscience, 2022、 Vol. 40 (8) “ノーベル賞の神経科学”、 928-933 “Ivan Petrovich Pavlov (1904) 条件反射を“発見”した, 記憶神経生物学の先駆者”)。メトロノームの音のような条件刺激に続いてエサの無条件刺激を与えることを繰り返すと、音の刺激だけでよだれをたらすようになった(図7参照)。当グループでは、この記憶形成の脳内過程を目の当たりにすることを目指し、最初に、ショウジョウバエの脳内に摂食を司令するニューロン、“フィーディング・ニューロン”を行動スクリーニング(G3, 2013)によって発見した(Nature, 2013)。このフィーディング・ニューロン上で記憶をつくるため、メトロノームの音の代わりに、棒を離す刺激を条件刺激として使用して条件付けの実験を行ったところ、棒を離す刺激がフィーディング・ニューロンを活動させ、摂食行動を引き起こすようになった(Sakurai et al., Curr. Biol. 2021)。現在、当グループにおいて、記憶に伴う脳内変化を追跡する実験を進めている。
局所フィードバック仮説 (The local feedback hypothesis)
活動する神経細胞の間に即時記憶が形成され、それが固定化されて長期記憶へと変化するための細胞機構を説明する一般仮説。シナプスにおいて、両側の細胞がお互いに強め合うことが即時記憶をつくり、それがシナプスの成長を促して長期記憶に変化する、と仮定した(図8参照)。ショウジョウバエの運動ニューロンと筋細胞間のシナプス可塑性(用語解説参照)における知見によって当グループの前身において提唱されたが(Yoshihara et al., Science, 2005)、当グループにおいて、上述の条件反射の実験系(用語解説参照)を活用して、脳内の記憶時での検証が進んでいる。
Hebbの法則に始まってこの仮説も示すように、プレとポストの活動が同期することによって長期間続くシナプス特異的な強化が生じると予測される。本研究では、即時性シナプス増強はプレだけの反応であったが、このプレの変化にどのようにしてポスト側の活動がカップルするのか、その相互作用が、長期記憶を見据えた次の重要なステップと考えられる。
Hebbの法則に始まってこの仮説も示すように、プレとポストの活動が同期することによって長期間続くシナプス特異的な強化が生じると予測される。本研究では、即時性シナプス増強はプレだけの反応であったが、このプレの変化にどのようにしてポスト側の活動がカップルするのか、その相互作用が、長期記憶を見据えた次の重要なステップと考えられる。
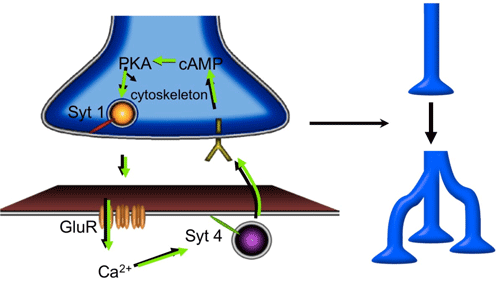
図8 記憶の一般メカニズム候補としての局所フィードバック仮説 (Yoshihara et al., Science, 2005)
本件に関する問合せ先
未来ICT研究所
吉原 基二郎E-mail: motojiro nict.go.jp
広報(取材受付)
広報部 報道室
E-mail: publicitynict.go.jp
nict.go.jp